De biologische vruchtbaarheid van een bodem is niet alleen afhankelijk van het organische stofgehalte. Recente meta-analyses die meer dan vijftig studies omvatten, bevestigen dat biologische landbouwsystemen een microbiële biomassa (koolstof en stikstof) en enzymactiviteit hebben die aanzienlijk hoger zijn dan die van conventionele systemen. De metabolische quotiënt verschilt echter niet tussen de twee productiemethoden, wat ons dwingt om sommige kortere uitspraken over de vermindering van microbiële stress door biologische methoden te heroverwegen.
Metabolisch quotiënt en enzymactiviteit: wat standaardanalyses niet vastleggen
We observeren regelmatig een discrepantie tussen de resultaten van klassieke bodemanalyses (pH, CEC, P Olsen) en het werkelijke gedrag van een perceel dat al meerdere teeltcycli biologisch wordt beheerd. De chemische indicatoren blijven stabiel, soms zelfs licht dalend, terwijl de structuur verbetert en de opbrengsten constant blijven.
Dit paradoxale fenomeen kan worden verklaard door de enzymatische dimensie. Dehydrogenase, urease en protease nemen aanzienlijk toe onder biologische teelt. Deze enzymen katalyseren de mineralisatie van organisch stikstof en de vrijgave van fosfor, twee processen die in de mineralenbalansen slechts met vertraging worden weerspiegeld.
Het metabolisch quotiënt (qCO2), vaak gepresenteerd als een marker voor microbiële stress, toont geen significante verschillen tussen biologisch en conventioneel. Met andere woorden, de microbiële biomassa neemt toe zonder dat de stress van de gemeenschappen afneemt. Een stabiele qCO2 interpreteren als een mislukking zou een fout zijn: het weerspiegelt eerder een rijkere gemeenschap die onderhevig is aan meer variabele hulpbronnencycli, typisch voor een systeem zonder regelmatige aanvoer van oplosbare mineralen.
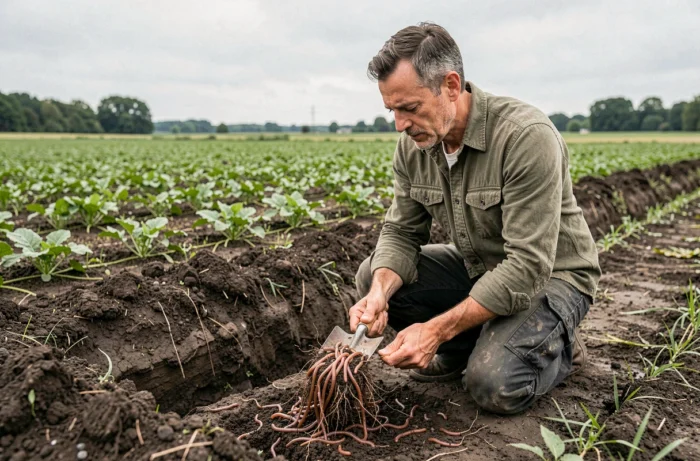
Beheer van organische hulpbronnen en microbiële gemeenschap van de bodem in biologische landbouw
Het beheer van organische hulpbronnen (mest, gewasresten, plantaardige biomassa) is de bepalende factor voor de evolutie van microbiële gemeenschappen, meer nog dan het simpele biologische label. Het type organische restitutie verandert de structuur van schimmel- en bacteriepopulaties veel dieper dan de afwezigheid van synthetische pesticiden.
We raden aan om twee vaak verwarde hefboompunten te onderscheiden:
- Labiele koolstof (worteluitwasemingen, jonge gemalen bedekkingen, oplosbare suikers) voedt de actieve fractie van het microbiële leven en genereert een snelle mineralisatie, nuttig aan het begin van de teeltcyclus.
- De recalcitrante koolstof (lignine, rijpe compost, fragmentarisch takkenhout) bouwt de voorraad stabiele humus op en verbetert de waterretentiecapaciteit op lange termijn.
- Gemengde aanvoeren, die composteerbare mest en gewasresten combineren, leveren de meest duurzame resultaten op de microbiële koolstofbiomassa, omdat ze beide pools gelijktijdig voeden.
Gespecialiseerde bronnen zoals die beschikbaar op terredhumus.fr documenteren deze strategieën voor organische aanvoeren die zijn aangepast aan percelen in transitie of al gecertificeerd.
Bedekkingen en C/N-verhouding: het malen afstemmen op de fenologische fase
Het malen van een bedekking vóór de bloei levert organisch materiaal met een lage C/N-verhouding, dat snel gemineraliseerd kan worden. Dit principe is bekend. Wat minder bekend is, is het effect van de keuze van C4-soorten (sorghum, millet) in de mix.
C3 en C4 combineren in een bedekking dekt twee verschillende bodemhorizonten, wat de biologische activiteit in het hele profiel verhoogt. C4-soorten ontwikkelen een dieper wortelsysteem dan de klassieke C3-soorten (mosterd, phacelia), wat de bodem in de diepte structureert.
Het moment van malen blijft de meest onderschatte parameter. Een gemalen sorghum bedekking die in de bloei staat, geeft zijn suikers binnen enkele dagen vrij. Dezelfde bedekking die tijdens de aarvorming wordt gemalen, levert meer gelignificeerd koolstof, nuttig voor de humusvoorraad maar niet bruikbaar door nitrificerende bacteriën op het moment van de volgende zaai. De fase van het malen bepaalt de synchronisatie tussen mineralisatie en de behoeften van de teelt.
Lange rotatie en biologische vruchtbaarheid van de bodem: het plateau-effect
Na meerdere jaren van biologische teelt bereiken de meeste biologische indicatoren een plateau. De microbiële biomassa stopt met groeien, de opbrengsten stabiliseren. Dit plateau is geen teken van degradatie.
Het weerspiegelt de balans tussen de koolstofinvoer (resten, bedekkingen, mest) en de uitvoer (mineralisatie, export door de oogsten). Het verlengen van de rotatie door een tijdelijke weide van twee tot drie jaar in te voeren, herstart de dynamiek. De weide levert een continue stroom van worteluitwasemingen die de mycorrhizale populaties en vrijlevende stikstofbindende bacteriën in stand houdt.
De diversificatie van de rotatie blijft de krachtigste hefboom voor de bodembiologie, vóór exogene aanvoeren.
Regelgeving van organische inputs in de biologische landbouw
In de biologische landbouw verbieden de specificaties het gebruik van rioolslib en reguleren ze strikt de compostering van ruwe mest. In Europa legt de biologische verordening beperkingen op aan de oorsprong en behandeling van meststoffen.
Deze verplichtingen zijn geen eenvoudige administratieve formaliteiten. Slecht gecomposteerde mest introduceert levensvatbare onkruidzaden en pathogenen. Het verstoort ook de C/N-verhouding ten koste van de labiele fractie, wat de mineralisatie vertraagt in plaats van versnelt.
De uitdaging voor biologische producenten is om elke organische input te traceren en de conformiteit ervan voor het uitbrengen te controleren. De meest voorkomende fouten hebben betrekking op compost van gemengde oorsprong (gemeentelijke groenafval gemengd met niet-toegestane resten) en digestaten van vergisting waarvan de samenstelling van partij tot partij varieert.
De vruchtbaarheid van een bodem in biologische landbouw wordt opgebouwd uit lange cycli. De enzymatische indicatoren en de microbiële biomassa reageren met een vertraging van meerdere seizoenen op de praktijken. Meten, de bedekkingen afstemmen op de juiste fenologische fase en de rotatie diversifiëren blijven de drie assen waarop we direct kunnen ingrijpen, zonder afhankelijk te zijn van dure externe inputs.