La fertilité biologique d’un sol ne se résume pas à son taux de matière organique. Les méta-analyses récentes intégrant plus de cinquante études confirment que les systèmes en agriculture biologique présentent une biomasse microbienne (carbone et azote) et des activités enzymatiques nettement supérieures à celles des systèmes conventionnels. Le quotient métabolique, lui, ne diffère pas entre les deux modes de production, ce qui oblige à reconsidérer certains raccourcis sur la réduction du stress microbien par le bio.
Quotient métabolique et activité enzymatique : ce que les analyses standard ne captent pas
Nous observons régulièrement un décalage entre les résultats d’analyses de terre classiques (pH, CEC, P Olsen) et le comportement réel d’une parcelle conduite en bio depuis plusieurs rotations. Les indicateurs chimiques restent stables, parfois même en léger recul, alors que la structure s’améliore et que les rendements se maintiennent.
Ce paradoxe s’explique par la dimension enzymatique. Déshydrogénase, uréase et protéase augmentent de façon substantielle sous conduite biologique. Ces enzymes catalysent la minéralisation de l’azote organique et la libération du phosphore, deux processus que les bilans minéraux ne reflètent qu’avec retard.
Le quotient métabolique (qCO2), souvent présenté comme marqueur de stress microbien, ne montre pas de différence significative entre bio et conventionnel. Autrement dit, la biomasse microbienne augmente sans que le stress des communautés diminue. Interpréter un qCO2 stable comme un échec serait une erreur : il traduit plutôt une communauté plus abondante mais soumise à des cycles de ressources plus variables, typiques d’un système sans apports minéraux solubles réguliers.
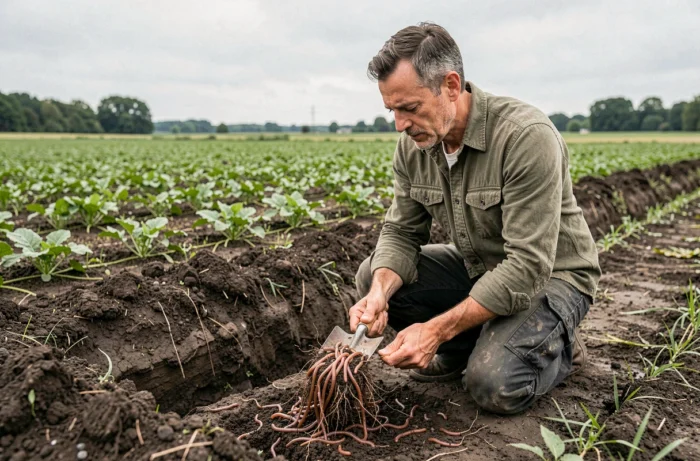
Gestion des ressources organiques et microbiome du sol en bio
La gestion des ressources organiques (fumier, résidus de culture, biomasse végétale) constitue le facteur déterminant de l’évolution des communautés microbiennes, davantage que le simple label bio. Le type de restitution organique modifie la structure des populations fongiques et bactériennes bien plus profondément que l’absence de pesticides de synthèse.
Nous recommandons de distinguer deux leviers souvent confondus :
- Le carbone labile (exsudats racinaires, couverts broyés jeunes, sucres solubles) alimente la fraction active du microbiome et génère une minéralisation rapide, utile en début de cycle cultural.
- Le carbone récalcitrant (lignine, compost mûr, bois raméal fragmenté) construit le stock d’humus stable et améliore la capacité de rétention en eau sur le long terme.
- Les apports mixtes, combinant fumier composté et résidus de couverts, produisent les résultats les plus durables sur la biomasse microbienne carbone, parce qu’ils alimentent simultanément les deux pools.
Des ressources spécialisées comme celles disponibles sur terredhumus.fr documentent ces stratégies d’apports organiques adaptées aux parcelles en transition ou déjà certifiées.
Couverts végétaux et rapport C/N : ajuster le broyage au stade phénologique
Broyer un couvert avant floraison restitue une matière organique à rapport C/N bas, rapidement minéralisable. Ce principe est connu. Ce qui l’est moins, c’est l’effet du choix d’espèces en C4 (sorgho, millet) dans le mélange.
Associer C3 et C4 dans un couvert couvre deux horizons de sol distincts, ce qui augmente l’activité biologique sur l’ensemble du profil. Les espèces en C4 développent un système racinaire plus profond que les C3 classiques (moutarde, phacélie), ce qui structure le sol en profondeur.
Le moment du broyage reste le paramètre le plus sous-estimé. Un couvert de sorgho broyé à montaison libère ses sucres en quelques jours. Le même couvert broyé à épiaison apporte un carbone plus lignifié, utile pour le stock humique mais inutilisable par les bactéries nitrifiantes au moment du semis suivant. Le stade de broyage conditionne la synchronisation entre minéralisation et besoin de la culture.
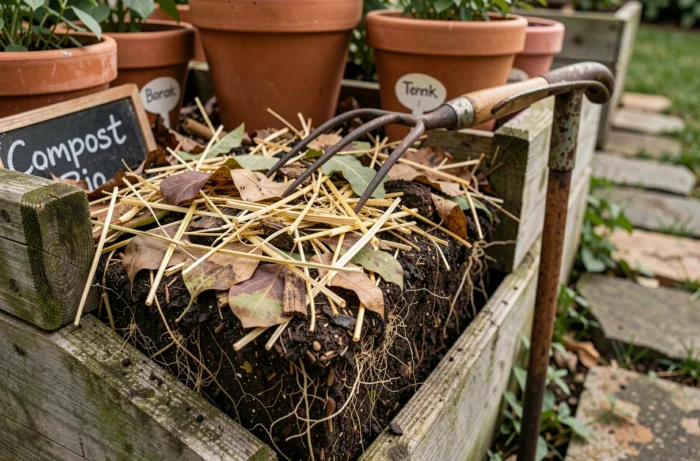
Rotation longue et fertilité biologique du sol : l’effet plateau
Après plusieurs années de conduite biologique, la plupart des indicateurs biologiques atteignent un plateau. La biomasse microbienne cesse de progresser, les rendements se stabilisent. Ce palier n’est pas un signe de dégradation.
Il reflète l’équilibre entre les entrées de carbone (résidus, couverts, fumier) et les sorties (minéralisation, exportation par les récoltes). Allonger la rotation en introduisant une prairie temporaire de deux à trois ans relance la dynamique. La prairie apporte un flux continu d’exsudats racinaires qui entretient les populations mycorhiziennes et les bactéries fixatrices d’azote libre.
La diversification de la rotation reste le levier le plus puissant sur la biologie du sol, devant les apports exogènes.
Réglementation des intrants organiques en agriculture biologique
En agriculture biologique, les cahiers des charges interdisent l’utilisation de boues d’épuration et encadrent strictement le compostage du fumier brut. En Europe, le règlement bio impose des contraintes sur l’origine et le traitement des matières fertilisantes.
Ces obligations ne sont pas de simples formalités administratives. Un fumier mal composté introduit des graines d’adventices viables et des pathogènes. Il déséquilibre aussi le rapport C/N au détriment de la fraction labile, ce qui ralentit la minéralisation au lieu de l’accélérer.
L’enjeu pour les producteurs bio consiste à tracer chaque intrant organique et à vérifier sa conformité avant épandage. Les erreurs les plus fréquentes concernent les composts d’origine mixte (déchets verts municipaux mélangés à des résidus non autorisés) et les digestats de méthanisation dont la composition varie d’un lot à l’autre.
La fertilité d’un sol en agriculture biologique se construit sur des cycles longs. Les indicateurs enzymatiques et la biomasse microbienne répondent aux pratiques avec un décalage de plusieurs saisons. Mesurer, ajuster les couverts au stade phénologique adapté et diversifier la rotation restent les trois axes sur lesquels nous pouvons agir directement, sans dépendre d’intrants extérieurs coûteux.