La fertilità biologica di un suolo non si limita al suo tasso di sostanza organica. Le meta-analisi recenti che integrano più di cinquanta studi confermano che i sistemi di agricoltura biologica presentano una biomassa microbica (carbonio e azoto) e attività enzimatiche nettamente superiori a quelle dei sistemi convenzionali. Il quoziente metabolico, invece, non differisce tra i due metodi di produzione, il che costringe a riconsiderare alcuni luoghi comuni sulla riduzione dello stress microbico attraverso il biologico.
Quoziente metabolico e attività enzimatica: ciò che le analisi standard non catturano
Osserviamo regolarmente un disallineamento tra i risultati delle analisi del suolo classiche (pH, CEC, P Olsen) e il comportamento reale di un appezzamento condotto in biologico da diverse rotazioni. Gli indicatori chimici rimangono stabili, talvolta anche in leggero calo, mentre la struttura migliora e i rendimenti si mantengono.
Questo paradosso si spiega con la dimensione enzimatica. Deidrogenasi, ureasi e proteasi aumentano in modo sostanziale sotto conduzione biologica. Questi enzimi catalizzano la mineralizzazione dell’azoto organico e il rilascio del fosforo, due processi che i bilanci minerali riflettono solo con ritardo.
Il quoziente metabolico (qCO2), spesso presentato come marcatore di stress microbico, non mostra differenze significative tra biologico e convenzionale. In altre parole, la biomassa microbica aumenta senza che lo stress delle comunità diminuisca. Interpretare un qCO2 stabile come un fallimento sarebbe un errore: traduce piuttosto una comunità più abbondante ma soggetta a cicli di risorse più variabili, tipici di un sistema senza apporti minerali solubili regolari.
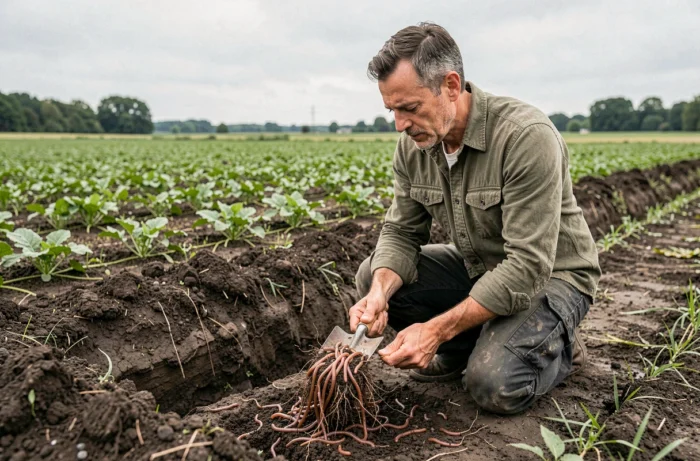
Gestione delle risorse organiche e microbioma del suolo in biologico
La gestione delle risorse organiche (letame, residui di coltivazione, biomassa vegetale) costituisce il fattore determinante dell’evoluzione delle comunità microbiche, più del semplice marchio biologico. Il tipo di restituzione organica modifica la struttura delle popolazioni fungine e batteriche molto più profondamente dell’assenza di pesticidi di sintesi.
Raccomandiamo di distinguere due leve spesso confuse:
- Il carbonio labile (esudati radicali, coperture fresche tritate, zuccheri solubili) alimenta la frazione attiva del microbioma e genera una mineralizzazione rapida, utile all’inizio del ciclo colturale.
- Il carbonio recalcitrante (lignina, compost maturo, legno ramificato frammentato) costruisce lo stock di humus stabile e migliora la capacità di ritenzione idrica a lungo termine.
- Gli apporti misti, combinando letame compostato e residui di coperture, producono i risultati più duraturi sulla biomassa microbica carbonio, perché alimentano simultaneamente i due pool.
Risorse specializzate come quelle disponibili su terredhumus.fr documentano queste strategie di apporti organici adattate agli appezzamenti in transizione o già certificati.
Coperture vegetali e rapporto C/N: adeguare la triturazione allo stadio fenologico
Triturare una copertura prima della fioritura restituisce una materia organica con un rapporto C/N basso, rapidamente mineralizzabile. Questo principio è noto. Ciò che è meno noto è l’effetto della scelta di specie in C4 (sorgo, miglio) nel mix.
Associare C3 e C4 in una copertura copre due orizzonti di suolo distinti, il che aumenta l’attività biologica su tutto il profilo. Le specie in C4 sviluppano un sistema radicale più profondo rispetto ai C3 classici (senape, facelia), il che struttura il suolo in profondità.
Il momento della triturazione rimane il parametro più sottovalutato. Una copertura di sorgo triturata a montaison rilascia i suoi zuccheri in pochi giorni. La stessa copertura triturata a epiazione apporta un carbonio più lignificato, utile per lo stock umico ma inutilizzabile dalle batteri nitrificanti al momento della semina successiva. Lo stadio di triturazione condiziona la sincronizzazione tra mineralizzazione e bisogno della coltura.
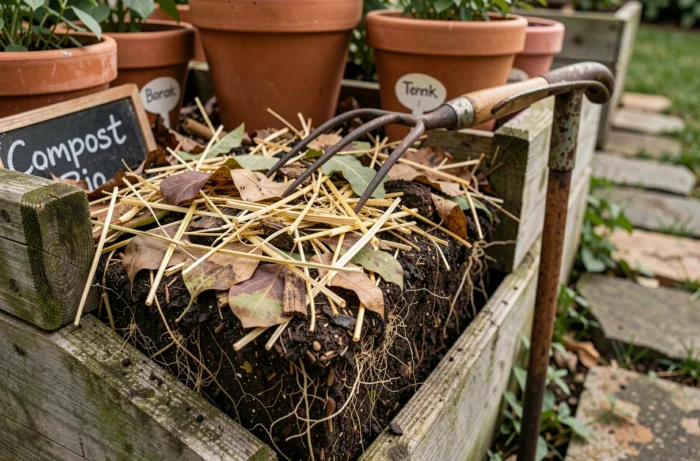
Rotazione lunga e fertilità biologica del suolo: l’effetto plateau
Dopo diversi anni di conduzione biologica, la maggior parte degli indicatori biologici raggiunge un plateau. La biomassa microbica smette di progredire, i rendimenti si stabilizzano. Questo plateau non è un segno di degrado.
Riflette l’equilibrio tra gli apporti di carbonio (residui, coperture, letame) e le uscite (mineralizzazione, esportazione tramite le raccolte). Allungare la rotazione introducendo un prato temporaneo di due o tre anni rilancia la dinamica. Il prato apporta un flusso continuo di esudati radicali che sostiene le popolazioni micorriziche e i batteri fissatori di azoto libero.
La diversificazione della rotazione rimane la leva più potente sulla biologia del suolo, davanti agli apporti esogeni.
Regolamentazione degli input organici in agricoltura biologica
In agricoltura biologica, i disciplinari vietano l’uso di fanghi di depurazione e regolano rigorosamente il compostaggio del letame grezzo. In Europa, il regolamento biologico impone vincoli sull’origine e il trattamento delle sostanze fertilizzanti.
Questi obblighi non sono semplici formalità amministrative. Un letame mal compostato introduce semi di piante infestanti vitali e patogeni. Sbilancia anche il rapporto C/N a discapito della frazione labile, il che rallenta la mineralizzazione invece di accelerarla.
La sfida per i produttori biologici consiste nel tracciare ogni input organico e verificare la sua conformità prima dell’applicazione. Gli errori più frequenti riguardano i compost di origine mista (rifiuti verdi municipali mescolati a residui non autorizzati) e i digestati di digestione anaerobica la cui composizione varia da un lotto all’altro.
La fertilità di un suolo in agricoltura biologica si costruisce su cicli lunghi. Gli indicatori enzimatici e la biomassa microbica rispondono alle pratiche con un disallineamento di diverse stagioni. Misurare, adeguare le coperture allo stadio fenologico adatto e diversificare la rotazione rimangono i tre assi su cui possiamo agire direttamente, senza dipendere da input esterni costosi.